病毒ie伴侣
ie伴侣 时间:2021-02-22 阅读:()
文章编号:1002-2694(2002)04-0105-03朊病毒分子生物学研究进展许于飞贾小明中图分类号:R373文献标识码:A令欧洲人谈虎色变的疯牛病和美国的Prusiner博士因朊病毒的发现获得1997年诺贝尔生理和医学奖〔1,2〕使朊病毒的研究备受人们关注.
朊病毒是一种新型的由蛋白质组成而缺乏核酸的侵染因子〔3〕,引起的病变主要是蛋白质淀粉样变性(amyloidosis),可导致神经元退化变性、脑组织海绵体化、胶质细胞增生及细胞内的朊病毒的自身积累等.
许多致命的哺乳动物中枢神经系统机能退化症均与此有关〔4〕,如人的库鲁病(kuru)、克雅氏症(Creutzfeldt-JakobDisease,CJD)、格施谢三氏症(GerstmannStraussierScheinkerDisease,GSSD)、致死性家族失眠症(FatalFamiliarInsomnia,FFL)和动物的羊瘙痒病(Scrapie)、牛海绵状脑病(BovinespongiformEncephalopathy,BSE或称疯牛病madcowdisease)、慢性消损病(ChronicWastingDisease,CWD)、猫海绵状脑病(FelinespongifoemEncephalopathy,FSE).
其中羊瘙痒病是知道最早的一种朊病毒病,它存在于英格兰已达200多年〔5〕.
朊病毒的发现有可能引起分子生物学和医学领域内的一场革命.
本文就朊病毒的分子生物学研究进展作一简述.
1致病性朊病毒的发现及其化学本质的研究对朊病毒的早期认识多源于羊瘙痒病的研究.
有人曾认为朊病毒病是由慢病毒引起的,但同大多数病毒不同,福尔马林溶液并不能完全消除其传染性.
Alper等〔6〕观察到一定剂量的254nm的紫外线不能使其失活,相反它对237nm的紫外线却非常敏感,这些特征使作者认为感染因子可能是一种不含核酸的蛋白质.
随后Griffith等〔7〕提出蛋白质致病假设,认为感染因子是由正常细胞蛋白经修饰后形成的.
1982年Prusiner〔8〕取感染了瘙痒病的实验动物脑组织制成匀浆,从脑匀浆中提取蛋白质,用反转重复聚焦凝胶电泳技术(returnrefocusinggelelectrophorosis)检测,没有发现核酸的存在,但这样的蛋白质仍有很强的感染力.
为了防止工作中有"漏网的核酸"残留,将提取的蛋白质,一方面作紫外光照射,紫外光的剂量足以灭活DNA病毒、RNA病毒,并用已知的DNA病毒、RNA病毒作对照.
已知病毒经照射后均失去感染力,而所提取的蛋白质仍有较强感染力;另一方面,将所提取的蛋白质用DNA酶、RNA酶处理,也将已知的DNA病毒、RNA病毒作对照,经过酶处理的已知病毒均失去感染力,而所提取的蛋白质经过DNA酶、RNA酶处理后仍有较强的感染力.
但若经过蛋白酶、蛋白变性剂的处理,所提取的蛋白质就失去感染力了.
Prusiner的实验说明:朊病毒的致病性不是由核酸引起的,而是由蛋白质引起的.
朊病毒是一种蛋白侵染颗粒(Proteinaceousinfectiousparticle.
Prion.
).
2致病性朊病毒和细胞型蛋白粒子从羊瘙痒病因子感染的仓鼠脑组织中分离到一种相对分子质量为27~30kD的蛋白质.
由于这种蛋白质能与瘙痒病因子共纯化,其浓度与瘙痒病因子的感染性正相关;这种蛋白纯化后具有传染性;并且其感染性可被中和抗体(neutralizihgantibody)中和,故将这种蛋白称为朊病毒蛋白(Prionprotein,PrP).
致病性朊病毒用PrPsc表示.
Prpsc具有抗蛋白酶K有限水解的能力,它特异地出现在被感染的脑组织中,呈淀粉样形式存在.
1984年Prusiner和LeroyE.
Hood〔9〕等测出了PrP蛋白末端15个氨基酸的序列为:"Gly,Gin,Gly,Gly,Gly,Thr,His,Asn,Gln,Trp,Asn,Lys,Pro,Ser,Lys",这序列经电脑与贮存的信息库查询,与现有任何一种蛋白质都无共同的序列.
根据PrPsc末端氨基酸序列合成寡核苷酸探针进行检测的结果发现,在正常的人和动物细胞DNA中有编码PrP的基因,且无论感染瘙痒病与否,宿主细胞PrPmRNA水平无变化,说明PrP是组成型基因表达的产物.
这种细胞的PrP称作细胞型蛋白粒子,用PrPc表示,相对分子质量33~35kD.
PrPc含有1对二硫键和2个N型复和寡糖链.
二硫键和糖基化的残基都在C端.
N端含有由22个氨基酸残基组成的信号肽序列,C端含有由23个氨基酸残基组成的糖基磷酸肌醇锚受体结合位点(GPI)〔10〕,说明它是一种膜糖蛋白.
现已证明它是定位于细胞膜的穴样内陷类结构域(CLDs)〔11〕.
正常细胞表达的Prpc与羊瘙痒病的Prpsc为同分异构体,Prpc与Prpsc有相同的氨基酸序列〔12〕,Prpc有43%的α螺旋和3%的β折叠,而PrPsc约有34%的α螺旋和43%的β折叠〔13,14〕.
多个折叠使PrPsc溶解度降低、对蛋白酶的抗性增加〔15〕.
Prpc对人和动物是无害的,它的蛋白主链缠饶形成双螺旋,当大多数蛋白主链伸展形成β折叠片时就由PrPc转变成了PrPsc,大量实验证明PrPsc能诱导PrPc分子的一个α螺旋变成一个β折叠片.
参用分子模式对PrPsc与Prpc的三维结构进行预测(见图1),认为PrPc是1个含4个α螺旋(H1-H4)的球型蛋白,在PrPsc中有2个螺旋H1和H2形成4个β折叠链,1个二硫键将H3和H4连接在一起,来稳定PrPsc的结构〔16〕.
3朊病毒的增殖既然PrPsc是一种蛋白质而且不含任何核酸,那么它在人或动物体内又是如何进行复制,如何进行传播的呢Prusiner等提出了朊病毒仅有蛋白质组成且系有细胞蛋白PrPc经翻译后修饰而转变为折叠异常的病理形态Prpsc这一假说〔17〕(见图2A).
Prusiner等认为朊病毒的增殖(Propagation)作者单位:浙江大学华家池校区生命科学学院微生物教研室(浙江,310029)5012002,18(4)中国人兽共患病杂志ChineseJournalofZoonoses1995-2004TsinghuaTongfangOpticalDiscCo.
,Ltd.
Allrightsreserved.
图1PrPsc与PrPc的分子结构模式图是一个指数增长的过程.
PrPsc首先与PrPc结合形成一个PrPsc-PrPc复合物,随后转变成2个分子的PrPsc.
在下一周期两分子PrPsc与PrPc结合,随后形成4分子PrPsc.
PrPsc与PrPc相互作用,从而复制(replication)出越来越多的PrPsc分子.
朊病毒研究的大量实验证实了Prusiner的假说.
PrPc向PrPsc转变是在细胞内膜上进行的,但BessenR.
A和Lans2buryP.
T.
〔18〕把PrPc与PrPsc混合,发现PrPc在试管内也能向PrPsc转变,可在试管内得到的PrPsc虽然与从患病动物脑组织中分离得到的蛋白质具有相同的理化性质,但却没有感染力.
朊病毒根据其感染途径可分为散发性、传染性和遗传性三种.
散发性和传染性朊病毒病的病毒复制机理见图2(B)〔19〕.
PrPc结构的随机不稳定产生极少数、部分解折叠的单体结构PrP3,PrP3是PrPc向PrPsc转变的中间体,它能重新变为PrPc,或被降解,或与PrPsc形成复合物.
正常情况下,PrP3的浓度很低,PrPsc不能形成.
当外源朊病毒进入细胞时,促使PrP3转变为PrPsc.
散发性朊病毒病,无外源朊病毒,PrPsc的浓度最终可能达到某个阈值.
其后,阳性反馈环道就促使PrPsc形成.
PrPscN-末端发生有限蛋白水解产生PrP27-30,它也能在瘙痒病感染细菌中由编码N-末端被截断PrP的重组载体产生.
PrPsc或PrP27-30变性为D-PrP,赋予它们以蛋白酶敏感性并使瘙痒病感染性消失.
而遗传性朊病毒病的病毒复制机理有所不同,见图2(C)〔19〕.
作为许多细胞的正常代谢的一部分,突变PrPPrPc被合成和降解.
PrPc结构不稳定,从而产生有意义量的部分解折叠的单体结构—PrP3,它是形成PrPsc的中间体.
能重新变为PrPc或转变为PrPsc.
PrPscN-末端被有限蛋白水解产生PrP27-30.
4PrP基因迄今已克隆了人、25种非人灵长类动物、仓鼠(叙利亚仓鼠、美国仓鼠、中国仓鼠)、小鼠(I/LnJ,R111S/J,MoLF/Ei小鼠和C57BL/6J,129Sv,N2W)、大鼠、牛、绵羊、水貂、大捻和阿拉伯大羚羊等的PrP基因,并推导和测定了它们的序列.
人的PrP基因(PRNP)位于第20号染色体的短臂上,小鼠的PrP基因(Prn-P)位于第2号染色体上.
PrP基因是单拷贝基因,这意味着PrP基因在哺乳动物物种分化时已存在〔2,4〕.
所有已知的哺乳动物和鸟类的PrP基因的整个开放性阅读框(ORF)都位于一个外显子,这就排除了PrPc和PrPsc可以通过mRNA剪切而导致两者结构不同的可能性.
PrP基因结构和其编码蛋白的序列是高度保守的.
人、仓鼠、小鼠、绵羊、牛、小貂之间PrP基因的同源性均高于80%,图2(A)PrPc向PrPsc转变的一般模式图,(B)散发性和传染性朊病毒病朊病毒复制机理,(C)遗传性朊病毒病朊病毒复制机理绵羊和牛的PrP基因同源性为98%,已被测定的25种非人灵长类动物和人PrP基因同源性为9219%~9916%〔20〕.
发生替代的位置是PrP对二级和三级结构的提供特殊信息的位置.
PrP基因序列被测定出后,不但能够找出不同个体的序号差异性(多态性),而且为找出这种差异性与表现型特征差异性之间的关系奠定了基础.
通过对小鼠和绵羊PrP基因的RFLP分析,已经发现了一种特有的表现型与潜伏期有关〔21〕.
在牛的PrP基因中还发现了两种多态性,一个是在576位核苷酸处能够造成HindII酶切位点出现或缺失的C与T相互变位;另一个是编码PrP8肽重复序列的数量差异〔22〕.
图3为人、小鼠和羊中PrP基因结构和基因多态性〔2〕.
目前有关学者正在研究HindII与8肽重复结构域等位基因出现的频率以及它们与病毒遗传易感性的可能关系,从而进一步研究与病毒发病率的关系.
图3人、小鼠和羊中PrP基因结构和基因多态性人PrP基因中有5个8重复体插入,开放阅读框中有4个保守区(H1~H4),A1B1C序列形成3个α-螺旋结构,S1、S2序列形成2个β折叠.
线上方为基因突变,下方为基因多态性,括号内数字是与人PrP基因对应的密码子位置5酵母朊病毒Glover及其同事发现酵母细胞质遗传因子〔PSI+〕和〔URE3+〕的许多特征类似哺乳动物朊病毒系统〔23,24〕.
Sup35p是酵母〔PSI+〕表型的决定因子,它在正常细胞601中国人兽共患病杂志ChineseJournalofZoonoses2002,18(4)1995-2004TsinghuaTongfangOpticalDiscCo.
,Ltd.
Allrightsreserved.
(〔psl-〕表型)中是可溶的,分布均匀,但在病变细胞(〔PSI+〕表型)中不溶,且凝集成团.
Sup35P是翻译终止子的一个亚基〔25,26〕,它的自我复制聚合会导致细胞内终止子的缺失,从而增强核糖体阅读无意义突变基因的趋势.
它有3个特殊的区段:C端、N端和中间区.
C端对终止子的活性和细胞的生活力有很重要的作用,N端和中间区使Sup35p获得一个稳定的朊病毒构型〔27〕,而且N端也是[PSI+]增殖所必需的〔26〕,在〔psl-〕型细胞中,N端和中间区的删除不会对细胞产生明显的影响,但在〔PSI+〕型细胞中,N端和中间的区的删除会导致朊病毒的消失(lossoftheprion)和翻译保真度的恢复.
在单细胞情况下,〔PSI+〕允许由一个基因组编码产生不同的可遗传的表型.
酵母细胞会以10-7-10-5的概率自发从〔psl-〕转变成〔PSI+〕〔28〕,因此一旦细胞达到一定数量,许多具有相同基因的细胞将获得一种新的可遗传的表型.
〔URE3+〕与Ure2P有紧密的关系,Ure2P对氮调节的转录激活因子Gln3起拮抗作用.
若Ure2P的氨基端缺失,细胞就不会获得〔URE3+〕.
Sup35P和Ure2P或仅其氨基端的超表达,能诱导出〔PSI+〕和〔URE3+〕〔29〕,而当这些蛋白质的基因置于其它启动子的控制之下时,〔PSI+〕和[URE3+]表型的出现依赖于启动子的调节物.
而到目前为止所知道的酵母细胞之间〔PSI+〕和〔URE3+〕的惟一传播途径是通过两个细胞间细胞质的扩散作用〔30〕.
酵母朊病毒的增殖需要分子伴侣Hsp104P的参与,高水平的Hsp104P会清除〔PSI+〕,但令人惊奇的是,缺少Hsp104P也会使〔PSI+〕消失.
Kushnirov等认为,Hsp104P能够将Sup35P聚合体剪切成许多小片段,这对于它在细胞中的稳定遗传和〔PSI+〕在体内的增殖是必要的.
6结语朊病毒病的发生表现在PrPsc的积累,但是致病的根本原因是由于PrPc的缺乏还是由于PrPsc的积累PrPc的生理功能是什么是否存在其他类型的朊病毒朊病毒病是继癌症、艾滋病之后对人类提出的又一巨大挑战,对朊病毒的由蛋白质复制蛋白质分子机理的研究也将带来分子生物学理论上的新突破.
7参考文献11TheAmericanaAnnualDanbury:Grolier1998.
417121ColesH.
Nobelrewardspriontheoryafteryearsofheateddebate〔J〕.
Nature,1997,389:529131PrusineSB.
Prion〔J〕.
ProcNatlAcadSciUSA,1998,95:13363~13383141PrusinerS.
B.
PriondiseaseandtheBSEcrisis〔J〕.
Science,1997,278:245~251151GravenorMB,HoinvilleLS,HoekA,etal.
ScrapieinBritainduringtheBSEyears〔J〕.
Nature,2000,406:584~585161PrusinerSB,NovelproteinaceousinfetiousparticlescauseScrapie〔J〕.
Science,1982,216(4542):136~140.
71PrusinerSB.
Prions〔J〕.
ScientificAmerican,1984,251(4):48~57.
81AlperT,CrampWA,HaigDA,etal.
Doestheagentofscrapierepli2catewithoutnucleicacid〔J〕.
Nature,1967,214:764~766.
91GriffithJS.
Selt-replicationandscrapie〔J〕.
Nature,1967,215:1043~1044.
101StahlN,BaldwinMA,HeakerR,etal.
Glycosylinositolphospho2lipidanchorsofthescrapieandcellularprionprotein〔J〕.
Biochem2istry,1992,31:5043~5053.
111VeyM,PilkuhnS,WilleH,etal.
Subcellularcolocalizationofthecellularandscrapieprionproteinincaveolae-likemembranousdo2mains〔J〕.
ProcNatlAcadSciUSA,1991,93:14945~14949.
121PrusinerS.
B.
ThePrionDisease〔J〕.
ScientificAmerican,1995,272:30~37.
131AguzziA,WeissmannC.
Prionresearch:thenextfrontiers〔J〕.
Na2ture,1997,389:795~798.
141Pan.
KM,BalidwinM,NgugenJ,etal.
Conversionofα-helicesin2toβ-sheetsfeaturesintheformationofthescrapieprionproteins〔J〕.
ProcNatlAcadSciUSA,1993,90:10962.
151PrusinerSB,etal.
Priondiseaseofhumanahdanimala〔J〕.
SeminersinVirology,1996,7:159~173.
161HuangZ,GabrielJM,BaldwinMA,etal.
Proposedthree-dimen2sionalstructureforthecellularprionprotein〔J〕.
ProcNatlAcadSciUSA,1994,91:7139~7143.
171沈萍.
微生物学〔M〕.
北京:高等教育出版社,2000,191~192.
181BessenRA,KociskoDA,LansburyPT,etal.
Non-geneticpropa2gationofstain-specificpropertiesofscrapieprionprotein〔J〕.
Na2ture,1995,375:698~700.
191CohenFE,PanKM,HuangZ,etal.
Structuralcluestoprionrepli2cation〔J〕.
Science,1994,264:530~531.
201SchatzlHM,CostaMD,TaylorL,etal.
Prionproteingenevaria2tionamongprimates〔J〕.
JMolBiol,1995,245:362~374.
211HunterN,FosterJD,BensonG,etal.
Restrictionfragmentlengthpolymorphismsofthescrapie-associationfibrilprotein(PrP)geneandtheirassociationwithsusceptibilitytonaturalscrapieinBritishsheep〔J〕.
JGenVirol,1991,72:1287~1292.
221阎玉河,等.
牛海绵状脑病的研究现状及进展〔J〕.
中国动物检疫,1996,13:31~34.
231LindquistS.
Madcowsmeetpsi-choticyeast:Theexpansionoftheprionhypothesis〔J〕.
Cell,1997,89:495~498.
241MastersCL.
andBeyreutherK.
Trackingturncoatprionproteins〔J〕.
Nature,1997,388:228~229.
251LI.
LahdLindquistS.
Creatingaprotein-basedelementofinheri2tance〔J〕.
Science,2000,287:661~664.
261SparrerHE.
SantosoA.
WeissmanJS,etal.
EvidencefortheprionHypothesis:InductionoftheYeast〔PSI+〕Factorbyinvitro-Con2vertedSup35protein〔J〕.
Science,2000,289:595~599.
271LiuJJandLindquistS.
Ologopeptide-repeatexpansionsmodulate'protein-only'inheritanceinyeast〔J〕.
Nature,1999,400:573~576.
281TrueHLandLiindquisySL.
Ayeastprionprovidesamechanismforgeneticvariationandphenotypicdiversity〔J〕.
Nature,2000,407:477~483.
291PatinoMMJJLindquistS.
SupportfortheprionHypothesisforinheritanceofaphenotypictraitinyeast〔J〕.
Science,1996,273:622.
301TuiteMFSowingtheproteinseedsofprionpropagation〔J〕.
Sci2ence,2000,289:556~557.
2001年11月7日收稿2001年2月8日修回7012002,18(4)中国人兽共患病杂志ChineseJournalofZoonoses1995-2004TsinghuaTongfangOpticalDiscCo.
,Ltd.
Allrightsreserved.
GigsGigsCloud($26/年)KVM-1GB/15G SSD/2TB/洛杉矶机房
GigsGigsCloud新上了洛杉矶机房国际版线路VPS,基于KVM架构,采用SSD硬盘,年付最低26美元起。这是一家成立于2015年的马来西亚主机商,提供VPS主机和独立服务器租用,数据中心包括美国洛杉矶、中国香港、新加坡、马来西亚和日本等。商家VPS主机基于KVM架构,所选均为国内直连或者优化线路,比如洛杉矶机房有CN2 GIA、AS9929或者高防线路等。下面列出这款年付VPS主机配置信息...
LightNode(7.71美元),免认证高质量香港CN2 GIA
LightNode是一家位于香港的VPS服务商.提供基于KVM虚拟化技术的VPS.在提供全球常见节点的同时,还具备东南亚地区、中国香港等边缘节点.满足开发者建站,游戏应用,外贸电商等应用场景的需求。新用户注册充值就送,最高可获得20美元的奖励金!成为LightNode的注册用户后,还可以获得属于自己的邀请链接。通过你的邀请链接带来的注册用户,你将直接获得该用户的消费的10%返佣,永久有效!平台目前...
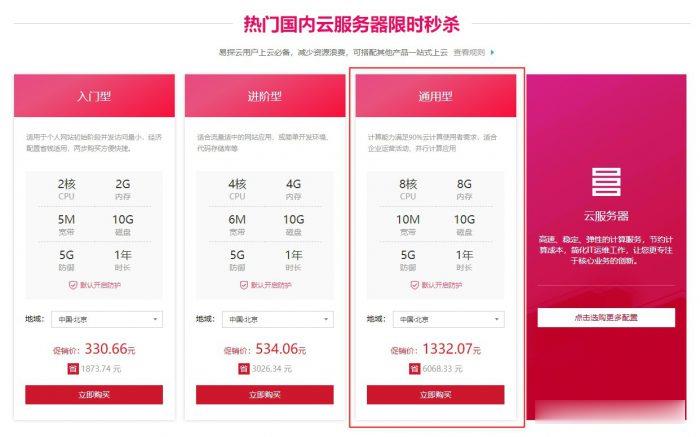
易探云(QQ音乐绿钻)北京/深圳云服务器8核8G10M带宽低至1332.07元/年起
易探云怎么样?易探云香港云服务器比较有优势,他家香港BGP+CN2口碑不错,速度也很稳定。尤其是今年他们动作很大,推出的香港云服务器有4个可用区价格低至18元起,试用过一个月的用户基本会续费,如果年付的话还可以享受8.5折或秒杀价格。今天,云服务器网(yuntue.com)小编推荐一下易探云国内云服务器优惠活动,北京和深圳这二个机房的云服务器2核2G5M带宽低至330.66元/年,还有高配云服务器...
ie伴侣为你推荐
-
博客外链请问怎么利用博客做外链呢云播怎么看片云播影视怎么样?天天酷跑刷积分教程葫芦侠3楼几十万的积分怎么刷天天酷跑积分怎么刷公章制作如何用photoshop制作公章微信如何建群在微信里怎么创建一个群别人可以加入扫描二维码的加入ps抠图技巧photoshop抠图技巧奇虎论坛奇虎论坛最新推荐歌曲列表·人人逛街过节了,这儿可真热闹写一段话虚拟专用网intranet,extranet,虚拟专用网与internet有什么区别与联系发邮件怎么发怎样发邮件?